La cascada neurocardíaca detrás del síndrome de Takotsubo: sobrecarga de calcio, toxicidad directa por adrenalina y la vulnerabilidad anatómica del ápice cardíaco.
Cuando el cerebro humano percibe una amenaza extrema, una noticia devastadora o una situación de dolor psíquico inasumible, el procesamiento emocional en la amígdala y el tronco encefálico activa una respuesta de supervivencia masiva. En condiciones fisiológicas cotidianas, esta reacción involucra un incremento medido del tono simpático para preparar al cuerpo para la huida o la defensa.
Sin embargo, frente a un choque emocional de magnitud descomunal, el sistema de regulación colapsa y desata una auténtica tormenta de catecolaminas. En este estado, los niveles plasmáticos de adrenalina, noradrenalina y dopamina pueden multiplicarse por diez o treinta veces respecto a sus valores basales, superando con creces las concentraciones observadas durante un infarto clásico de miocardio. Esta marea hormonal arrolla los mecanismos protectores del corazón y altera de forma temporal la biomecánica del ventrículo izquierdo.
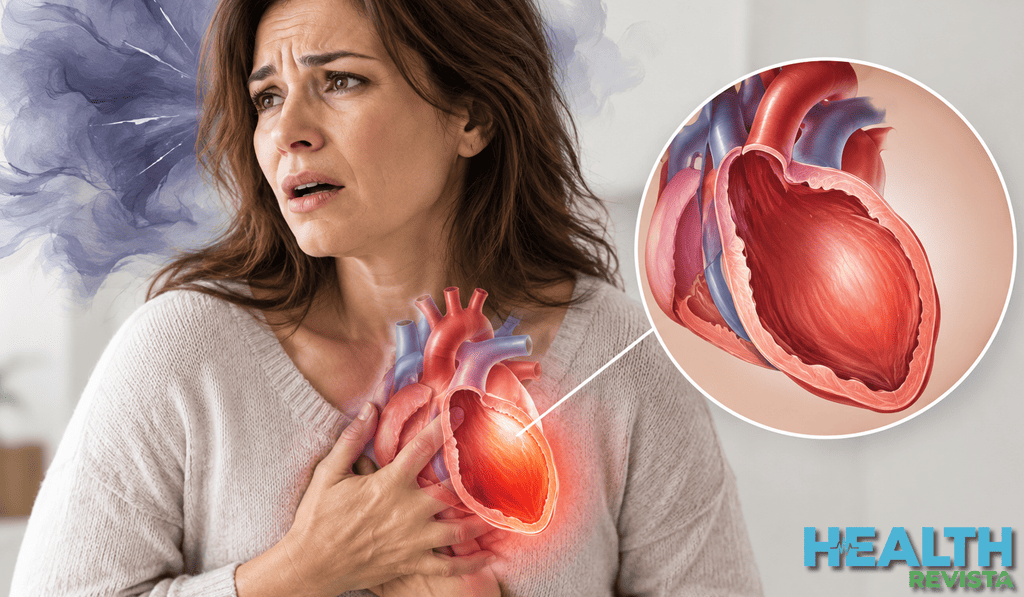
1. El gradiente de receptores: Por qué la punta del corazón se paraliza
Una de las preguntas más fascinantes que resolvió la biología molecular sobre el síndrome de Takotsubo es por qué el miocardio no se paraliza de manera homogénea en toda su superficie, sino que se aturde predominantemente en el tercio medio y apical (la punta), mientras que los segmentos de la base continúan hipercontráctiles.
La explicación reside en la distribución de los receptores adrenérgicos en la pared ventricular:
- Densidad diferencial de receptores beta: El tejido muscular del ápice del corazón posee la mayor concentración de receptores beta-adrenérgicos por unidad de superficie de todo el órgano.
- Inervación simpática desigual: Aunque las terminaciones nerviosas simpáticas son más abundantes en la base del corazón, la sangre arterial cargada de catecolaminas circulantes inunda todo el miocardio. Al tener más receptores para captar esa señal en la punta, el ápice absorbe la mayor parte del impacto tóxico.
- El cambio de señalización intracelular: Frente a concentraciones fisiológicas de adrenalina, los receptores beta-2 se acoplan a la proteína G estimuladora, aumentando la fuerza de contracción. No obstante, frente a concentraciones masivas y potencialmente letales de catecolaminas, la célula cardíaca experimenta un mecanismo de conmutación adaptativo: los receptores se desacoplan y se unen a la proteína G inhibidora. Este giro bioquímico bloquea la entrada de más energía, induciendo una disminución brusca de la contractilidad que paraliza el ápice para evitar la muerte celular por agotamiento.
2. Sobrecarga intracelular de calcio y estrés oxidativo
A nivel microscópico, el baño masivo de catecolaminas desequilibra el manejo de los iones dentro de los cardiomiocitos:
- Entrada descontrolada de calcio: La estimulación adrenérgica excesiva abre de par en par los canales de calcio de la membrana y del retículo sarcoplásmico. Este flujo masivo satura los mecanismos de bombeo de la célula muscular, provocando un estado de rigidez y desacople metabólico.
- Generación de radicales libres: El catabolismo acelerado de la adrenalina y la noradrenalina produce metabolitos oxidativos altamente citotóxicos (adrenocromo y especies reactivas de oxígeno). Estos compuestos dañan transitoriamente las membranas mitocondriales, frenando la síntesis de ATP, la moneda energética fundamental que necesita el miocito para contraerse y relajarse.
- Ausencia de necrosis extendida: A diferencia de lo que ocurre en un infarto obstructivo, donde la falta total de riego sanguíneo causa la muerte celular irreversible con rotura de membrana, en el Takotsubo las células no mueren en masa. Sufren un estado de aturdimiento metabólico agudo pero transitorio.
3. Espasmo de la microvasculatura coronaria
El daño miocárdico en el Takotsubo no solo es directo sobre la célula muscular, sino también vascular, focalizado en los vasos más diminutos:
Las arterias coronarias epicárdicas principales (las grandes ramas visibles en un cateterismo convencional) suelen mantenerse abiertas. Sin embargo, la red de microcirculación capilar y las pequeñas arteriolas intramiocárdicas reaccionan ante la descarga de noradrenalina con un espasmo vascular difuso.
Esta vasoconstricción microvascular transitoria reduce de manera drástica la perfusión tisular en las zonas más distales de la pared ventricular, generando pequeñas áreas de isquemia focal que explican por qué el electrocardiograma se altera y las troponinas cardíacas se elevan en sangre, simulando en todo momento un infarto de miocardio en evolución.
4. De la biología celular a la mecánica del ventrículo
La suma de la parálisis apical y la hipercontractilidad compensatoria de la base ventricular genera una deformidad geométrica aguda. En cada sístole, la base del ventrículo se cierra con fuerza desmedida sobre sí misma, mientras que el ápice se abomba pasivamente con la sangre retenida.
Este comportamiento mecánico no solo reduce de forma sustancial el volumen de sangre que el corazón logra bombear hacia el resto del cuerpo, sino que puede generar una obstrucción transitoria en el tracto de salida del ventrículo izquierdo, complicando el cuadro con insuficiencia cardíaca aguda o edema agudo de pulmón.
Analizar la toxicidad de las catecolaminas a nivel tisular permite desentrañar el nexo fisiológico desarrollado en la guía médica sobre el síndrome de Takotsubo y la miocardiopatía por estrés, demostrando con rigor científico cómo una experiencia emocional devastadora puede transformarse de manera directa en una alteración anatómica y funcional aguda dentro del corazón humano.